特定遺伝子座増幅断片シーケンス(SLAF-Seq)
ワークフロー
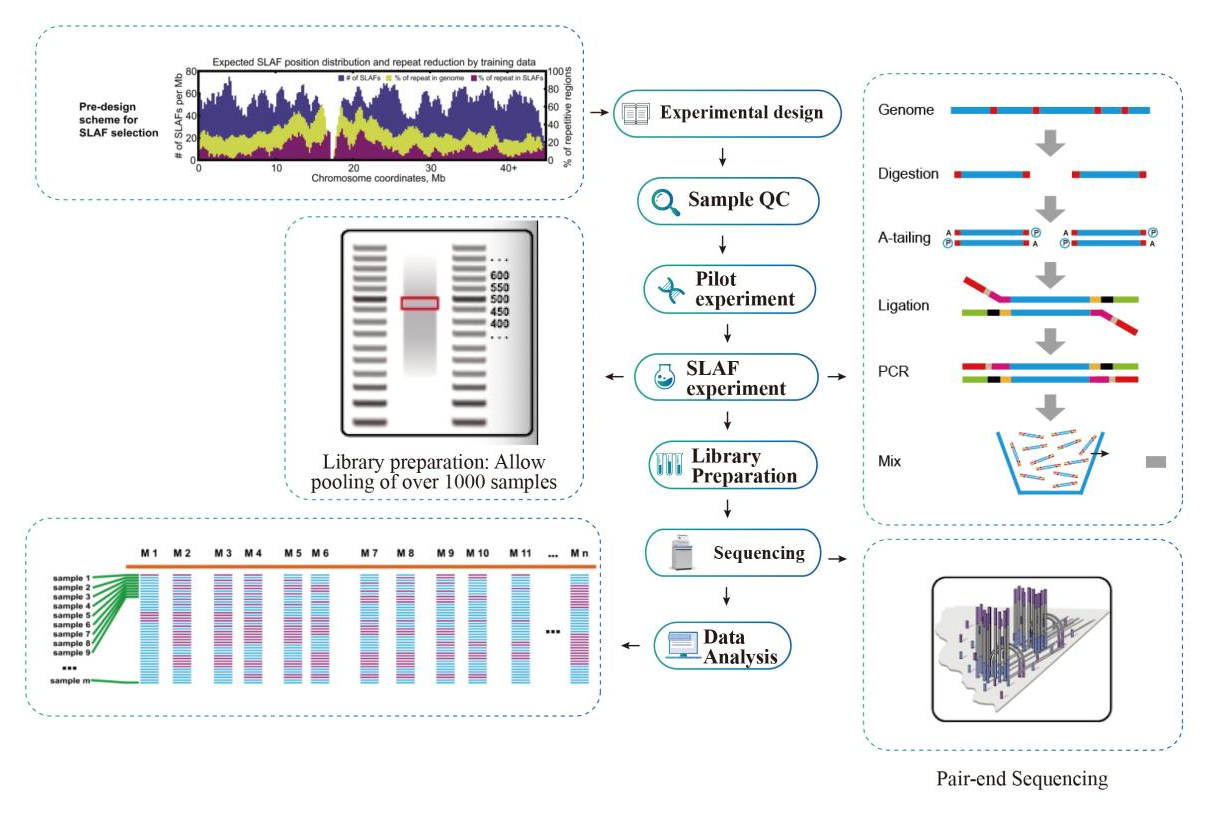
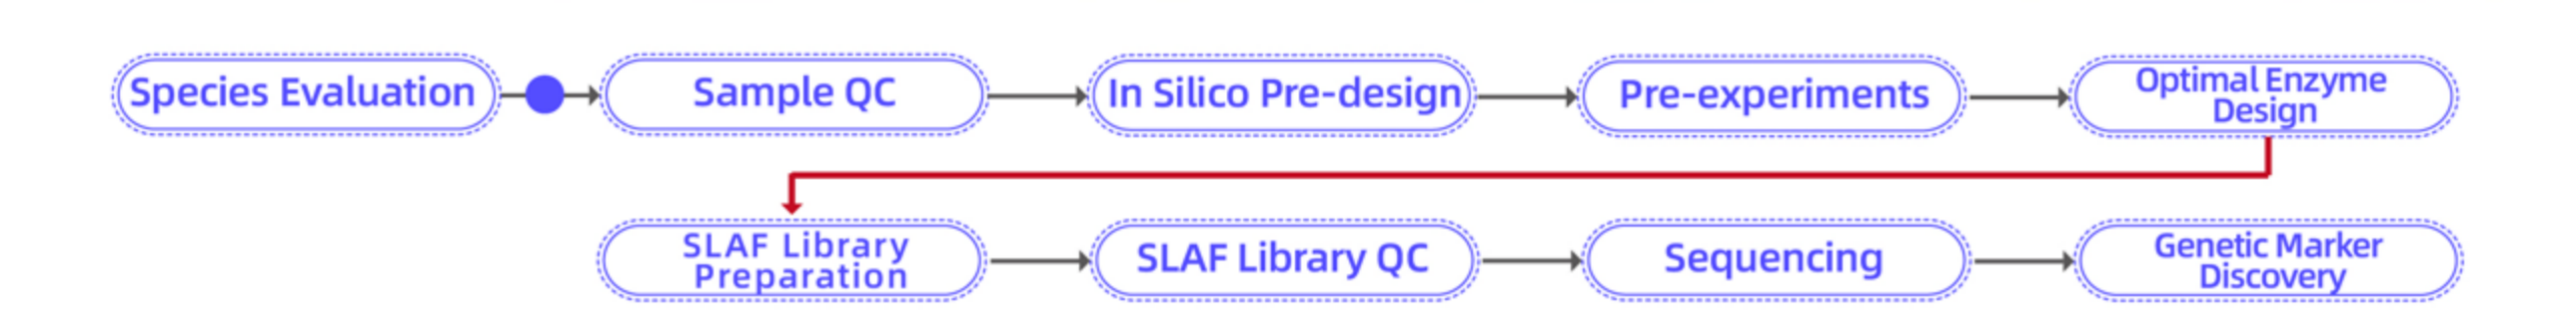
このサービスでは、ライブラリー調製時の最適な酵素選択を保証するために、コンピュータ上での事前設計が一部行われています。
技術計画

サービスの特徴
● NovaSeqとPE150を用いたシーケンス解析。
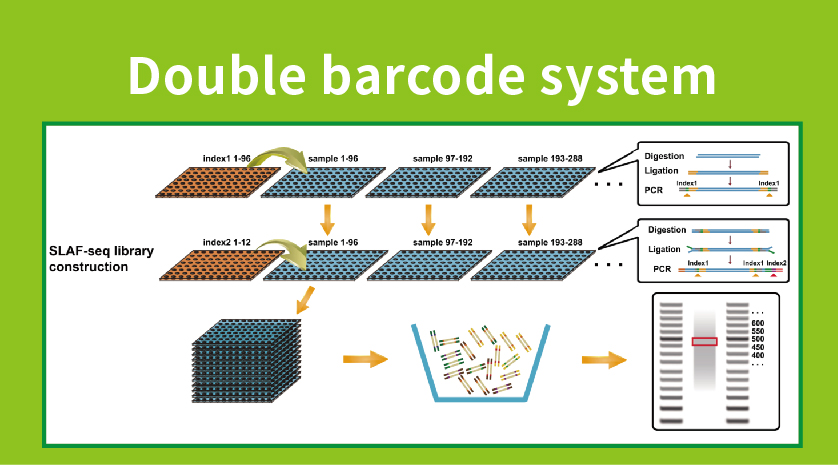
● 二重バーコードによるライブラリー調製により、1000以上のサンプルをプールすることが可能。
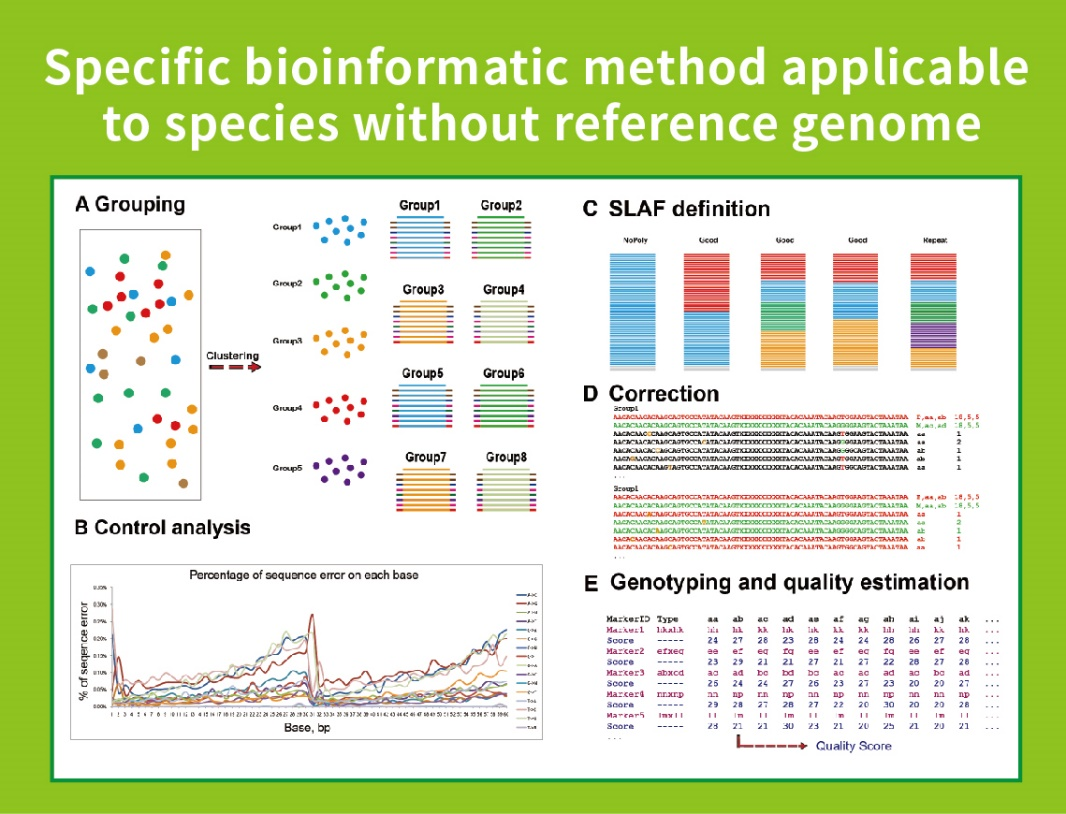
●参照ゲノムに依存しない:
参照ゲノムを用いたSNPおよびInDelの検出
参照ゲノムなし:サンプルクラスタリングとSNP発見
●インシリコ設計前の段階では、複数の制限酵素の組み合わせをスクリーニングし、ゲノム全体にSLAFタグが均一に分布する組み合わせを見つける。
● 事前実験では、3つの酵素の組み合わせを3つのサンプルでテストして9つのSLAFライブラリを作成し、この情報を使用してプロジェクトに最適な制限酵素の組み合わせを選択します。
サービスの利点
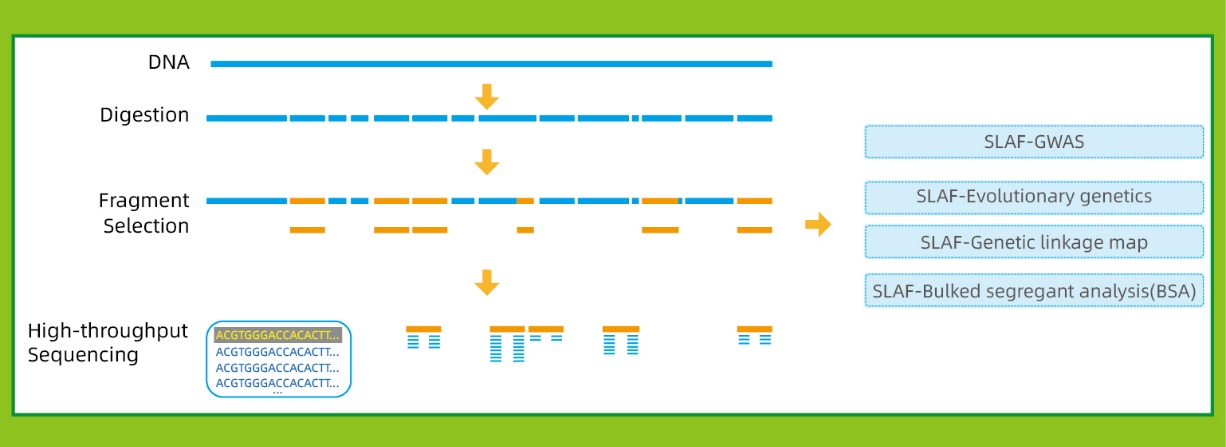
●高精度遺伝子マーカーの発見: 当社は、大規模集団の同時シーケンスを可能にするハイスループットのダブルバーコードシステムと、効率を高める遺伝子座特異的増幅を統合し、タグ数が様々な研究課題の多様な要件を満たすことを保証します。
● ゲノムへの依存度が低い参照ゲノムの有無にかかわらず、あらゆる種に適用可能です。
●柔軟な計画設計単一酵素、二酵素、多酵素消化、および様々な種類の酵素を選択することで、異なる研究目標や対象種に対応できます。
● 酵素消化における高い効率性: の実施インシリコ事前設計と事前実験により、染色体上にSLAFタグが均等に分布し(1 SLAFタグ/4Kb)、反復配列が低減された(5%未満)最適な設計が保証されます。
●豊富な専門知識私たちは、植物、哺乳類、鳥類、昆虫、水生生物など数百種にわたる5000件以上のSLAF-Seqプロジェクトを完了させた実績を持ち、あらゆるプロジェクトに豊富な経験をもたらします。
● 独自開発のバイオインフォマティクスワークフロー最終出力の信頼性と正確性を確保するため、SLAF-Seq用の統合バイオインフォマティクスワークフローを開発しました。
サービス仕様
| 分析の種類 | 推奨人口規模 | シーケンス戦略 | |
| タグシーケンスの深度 | タグ番号 | ||
| 遺伝子地図 | 親2人、子150人以上 | 両親: 20倍WGS 子孫:10倍 | ゲノムサイズ: <400 Mb: WGSを推奨 <1GB: 10万タグ 1~2GB:: 20万タグ >2GB: 300Kタグ 最大50万タグ |
| ゲノムワイド関連解析(GWAS) | 200サンプル以上 | 10倍 | |
| 遺伝的進化 | 30サンプル以上、各サブグループから10サンプル以上 | 10倍 | |
サービス要件
濃度 ≥ 5 ng/µL
総量 ≥ 80 ng
アガロースゲル:劣化や汚染がほとんどない、またはごくわずか
推奨サンプル配送
容器:2ml遠心分離管
(ほとんどのサンプルについては、エタノールでの保存はお勧めしません。)
サンプルラベル:サンプルには明確なラベルを貼付し、提出されたサンプル情報フォームの内容と同一である必要があります。
輸送方法:ドライアイス:サンプルはまず袋に詰め、ドライアイスの中に埋める必要があります。
サービスワークフロー
サンプル品質管理
パイロット実験
SLAF実験
図書館の準備
シーケンス解析
データ分析
アフターサービス
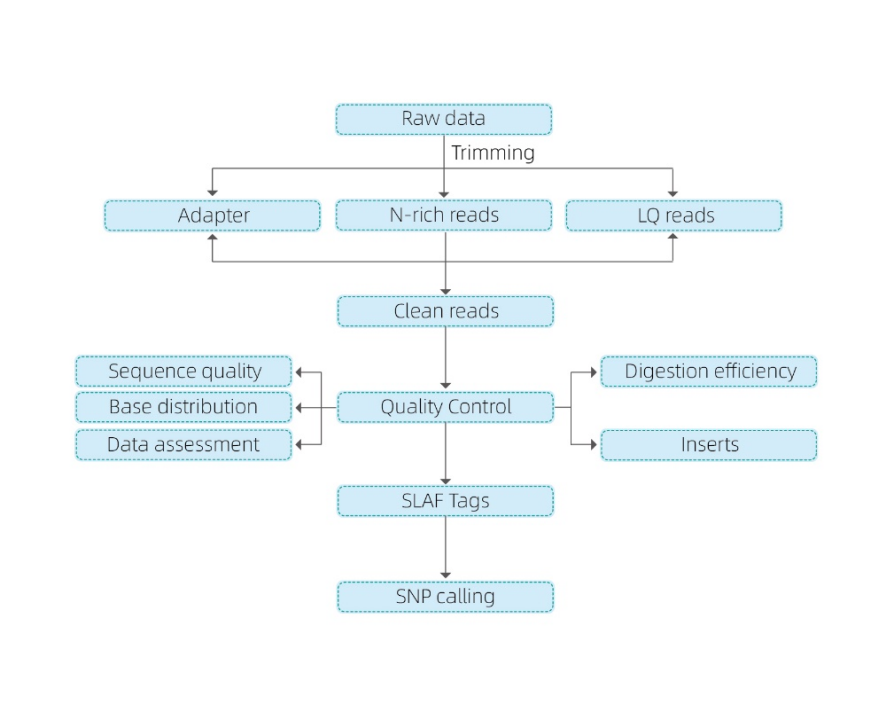 当社のバイオインフォマティクス解析は以下の要素から構成されます。
データ品質管理とデータトリミングを行い、Nリッチリード、アダプターリード、または低品質リードを除去します。
クリーンリードの2回目の品質管理では、塩基分布、配列品質、データ評価を確認するだけでなく、消化効率と得られた挿入配列も確認します。
読み取り結果の確認が完了したら、2つの選択肢があります。
- 参照ゲノムへのマッピング
- 参照ゲノムなし:クラスタリング
その後、SLAFタグの解析を用いて、マーカー発見に役立つバリアントコール(SNP、InDel、SNV、CVコールおよびアノテーション)が行われます。
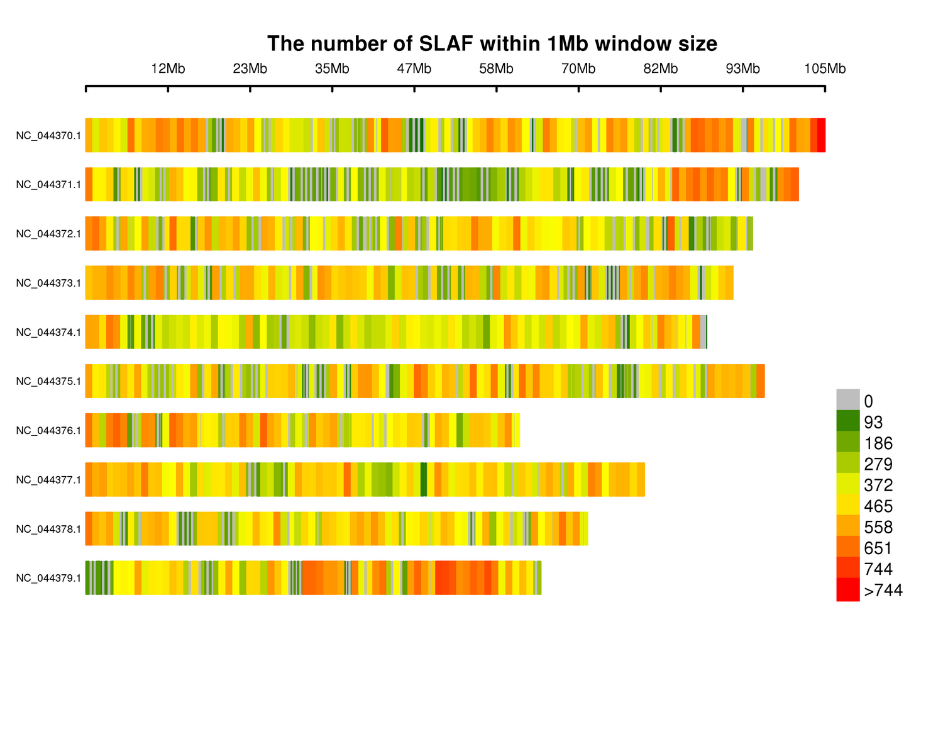
染色体上のSLAFタグの分布:
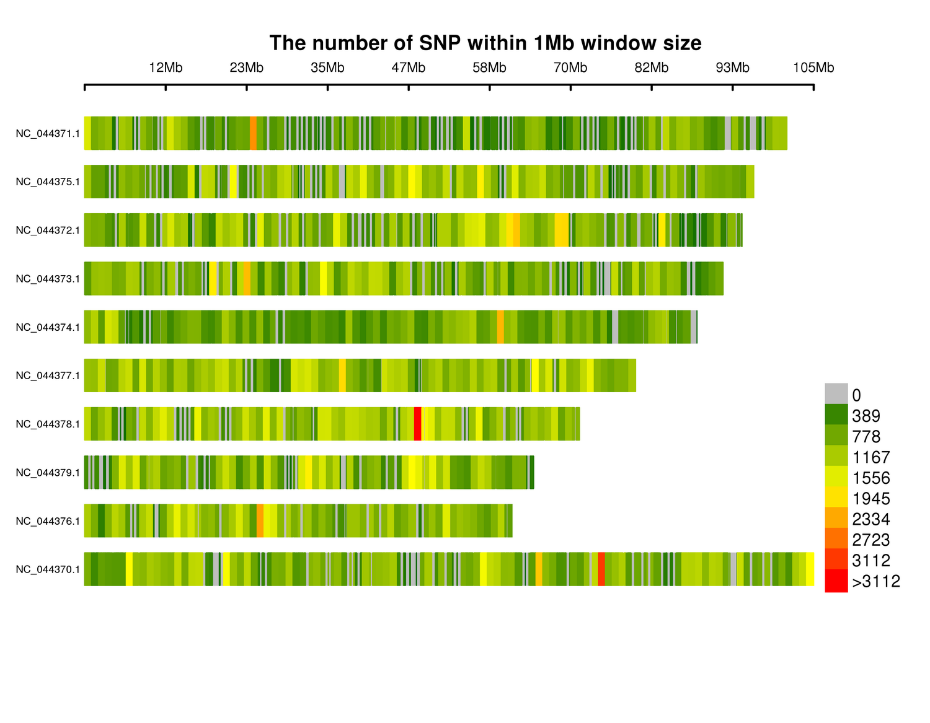
染色体上のSNPの分布:
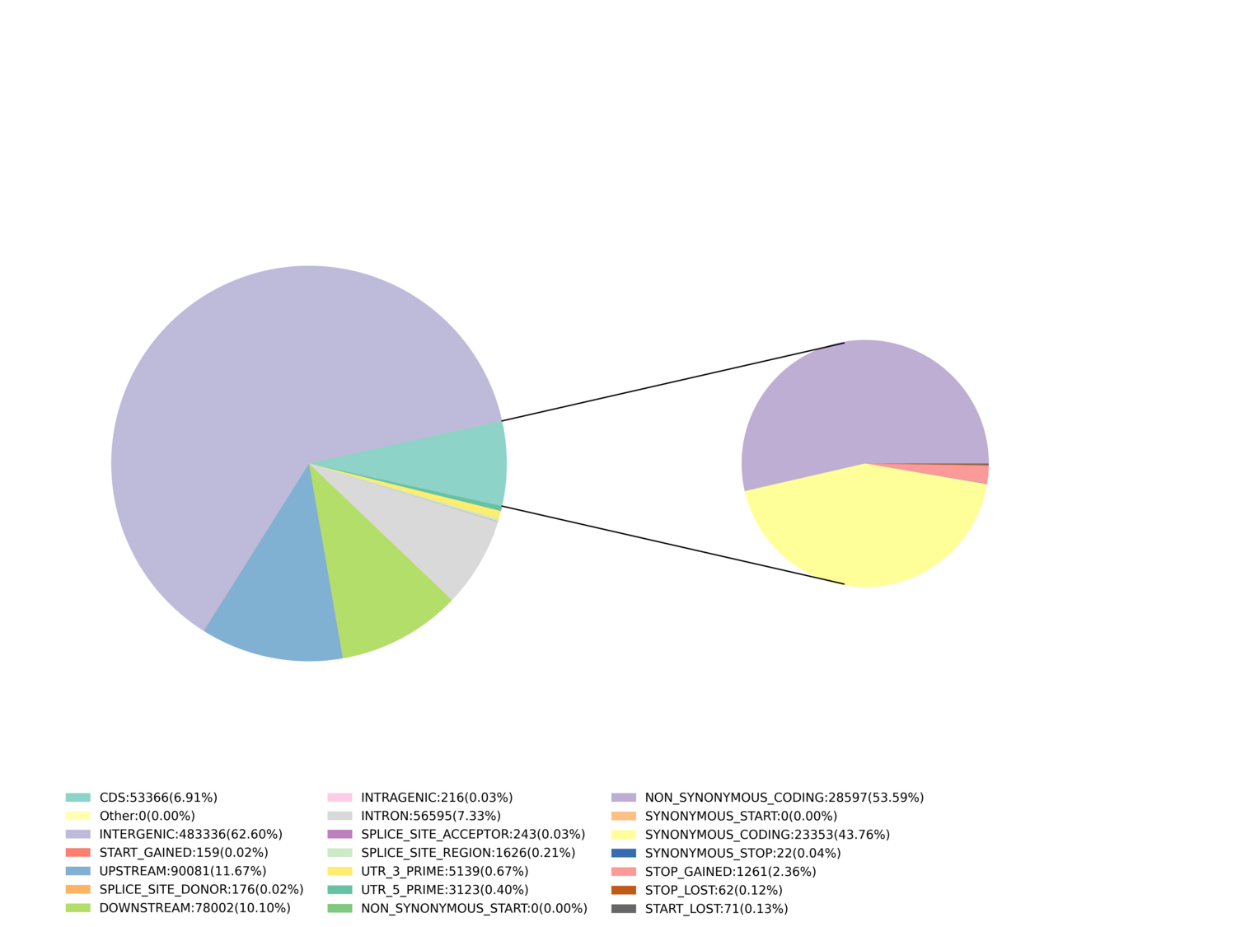
 SNPアノテーション
Jiang S、Li S、Luo J、Wang X、Shi C (2023) 果実成熟中の糖含量のQTLマッピングとトランスクリプトーム解析セイヨウナシ。Front. Plant Science.14:1137104。土井: 10.3389/fps.2023.1137104
Li, J., Zhang, Y., Ma, R., Huang, W., Hou, J., Fang, C., & Sun, L. (2022). st1の同定により、ダイズの栽培化における種子形態と油分含有量のヒッチハイクを伴う選択が明らかになった。植物バイオテクノロジージャーナル、20(6)、1110-1121。https://doi.org/10.1111/pbi.13791
Xu、P.、Zhang、X.、Wang、X.他コイのゲノム配列と遺伝的多様性、コイ(Cyprinus carpio)。ナットジェネト 46、1212–1219 (2014)。https://doi.org/10.1038/ng.3098
Zhuang、W.、Chen、H.、Yang、M.他栽培ピーナッツのゲノムは、マメ科植物の核型、倍数体進化、作物栽培化に関する知見を提供する。ナットジェネト 51、865–876 (2019)。https://doi.org/10.1038/s41588-019-0402-2
| 年 | ジャーナル | IF | タイトル | アプリケーション |
| 2022 | ネイチャーコミュニケーションズ | 17.694 | ボタンの巨大染色体と巨大ゲノムのゲノム基盤 ボタン・オスティー | SLAF-GWAS |
| 2015 | 新植物学者 | 7.433 | 家畜化の痕跡は、農業的に重要なゲノム領域を固定する 大豆 | SLAF-GWAS |
| 2022 | 先端研究ジャーナル | 12.822 | Gossypium barbadenseのゲノム全体にわたるG. hirsutumへの人工的な遺伝子導入 綿繊維の品質と収量を同時に向上させる優れた遺伝子座を明らかにする 特性 | SLAF-進化遺伝学 |
| 2019 | 分子植物 | 10.81 | 集団ゲノム解析とデノボアセンブリにより雑草の起源が明らかに 進化ゲームとしての米 | SLAF-進化遺伝学 |
| 2019 | ネイチャー・ジェネティクス | 31.616 | コイ(Cyprinus carpio)のゲノム配列と遺伝的多様性 | SLAFリンケージマップ |
| 2014 | ネイチャー・ジェネティクス | 25.455 | 栽培ピーナッツのゲノムは、マメ科植物の核型、倍数体に関する洞察を提供する。 進化と作物の栽培化。 | SLAFリンケージマップ |
| 2022 | 植物バイオテクノロジージャーナル | 9.803 | ST1の同定により、種子形態のヒッチハイクを伴う選択が明らかになった。 大豆の栽培化過程における油分含有量 | SLAFマーカーの開発 |
| 2022 | 国際分子科学ジャーナル | 6.208 | コムギ-Leymus mollis 2Ns (2D) の同定とDNAマーカーの開発 二倍体染色体置換 | SLAFマーカーの開発 |
| 年 | ジャーナル | IF | タイトル | アプリケーション |
| 2023 | 植物科学の最前線 | 6.735 | Pyrus pyrifoliaの果実成熟過程における糖含量のQTLマッピングとトランスクリプトーム解析 | 遺伝子地図 |
| 2022 | 植物バイオテクノロジージャーナル | 8.154 | ST1の同定により、ダイズの栽培化の過程で種子の形態と油分含有量が偶然にも選抜されたことが明らかになった。
| SNPコール |
| 2022 | 植物科学の最前線 | 6.623 | 干ばつ環境下における殻なし大麦の表現型のゲノムワイド関連解析。
| GWAS |